


 9
 12 мин
Синдром хронической нейропатической боли
В данной статье мы обсудим основные моменты, связанные с механизмом развития синдрома хронической боли. Ведь боль — это самый частый симптом, с которым мы сталкиваемся в нашей работе каждый день. Если с острой болью все довольно понятно — есть какой-то воздействующий на организм фактор, мы его устраняем, купируем воспалительный процесс, убираем медиаторы воспаления и забываем про боль, то с хроническим процессом все не так просто.
В начале мы поговорим про то, как в принципе передается болевой сигнал по нервной системе, потом наложим на это патологические процессы, которые происходят на различных этапах при хронизации (где, что и как ломается), поговорим о критериях диагноза «нейропатическая боль» и обсудим основные препараты, которые мы используем для купирования и контроля хронической нейропатической боли.
Что такое боль и как ее классифицируют
Начнем с того, что боль, по определению BSAVA — это неприятный сенсорный и эмоциональный опыт, который вызывает защитные двигательные реакции, приводит к формированию условного избегания и может изменять специфические для вида поведенческие черты, включая социальное поведение.
По своей сути боль — защитная реакция организма в ответ на повреждение, однако все не так просто. В формировании болевого синдрома существуют определенные механизмы, а пластичность ЦНС при нелеченной или плохоконтролируемой боли может приводить к формированию некорректного болевого ответа на неповреждающие стимулы. Но об этом позже.
У боли огромная классификация, сейчас мы не будем в нее углубляться, остановимся на нескольких определениях, которые близки к нашей сегодняшней теме.
- Психогенная боль — боль, вызванная, усиленная или продленная психическими, эмоциональными или поведенческими факторами. Устаревший термин, на текущий момент модно называть такую боль ноципластической.
- Ноципластическая боль — боль, которая возникает из-за измененной ноцицепции, несмотря на отсутствие явных доказательств фактического или угрожающего повреждения тканей, вызывающего активацию ноцицепторов, или признаков заболевания/поражения соматосенсорной системы, вызывающего боль (IASP*).
- Нейрогенная боль — это любая боль, вызванная дисфункцией периферической или центральной нервной системы. Более широкое объединяющее понятие (можно встретить в литературе наряду с нейропатической болью, сейчас как отдельная субъединица выведена из определений IASP*).
- Нейропатическая боль — боль, вызванная поражением или заболеванием соматосенсорной нервной системы, то есть ее чувствительной части (IASP*).
*определения взяты у международной ассоциации по изучению боли (IASP).
Для того чтобы мы или наши пациенты почувствовали боль, необходимо, чтобы болевой импульс от ноцицептора дошел до коры головного мозга, до этого момента мы будем говорить только о передаче нервного импульса, но как боль это восприниматься не будет.
Как передается болевой сигнал
В механизме передачи боли есть 4 основных процесса — трансдукция, трансмиссия, модуляция и перцепция.
Начнем с трансдукции — это процесс, при котором болевые стимулы (механические, термические или химические) при достижении пороговой силы преобразуются в нервный импульс, воздействуя на ноцицептор и открывая вольтаж-зависимые каналы, тем самым запуская распространение потенциала действия по нервному волокну.
И этот процесс передачи импульса уже называется фазой трансмиссии. В данной фазе в плане боли нас будут интересовать 2 типа волокон: Aδ-волокна и С-волокна.
Aδ-волокна — более тонкие, миелинизированные, содержат на своих терминалях 2 типа ноцицепторов (термические и механические) и передают информацию о первичном ощущении боли (например, короткая острая колющая боль от укола иголкой).
С-волокна — более толстые, немиелинизированные (более медленные), содержат на своих терминалях все три типа ноцицепторов, включая химические, и передают информацию о вторичном ощущении боли (например, жгучая боль после инъекции анальгина или серении).
Первый синапс: рецепторы AMPA, NMDA и NK-1
Далее наш сигнал добегает до первого места синапса — в дорсальном роге спинного мозга. И здесь нас будут интересовать 2 типа рецепторов на 2-м нейроне — AMPA и NMDA.
AMPA — простой рецептор, а NMDA — сложный. Для того чтобы АМРА-рецептор открылся и запустил во второй нейрон Na (деполяризацию), ему достаточно только глутамата — основного нейромедиатора, который выбрасывается в синаптическую щель из везикул при помощи Са. Глутамат, как ключ к замку, встраивается в АМРА-рецептор и открывает его. Данный рецептор реагирует абсолютно на каждый импульс, как от Aδ-волокон, так и от С-волокон. NMDA-рецепторы в норме закрыты пробкой из магния и реагируют только на повторяющийся сигнал от С-волокон. При этом, чтобы рецептор открылся, необходимо сразу несколько условий. Во-первых, чтобы глутамат и глицин одновременно сели на рецептор, во-вторых — чтобы накопился достаточный электрический потенциал в нейроне (при помощи АМРА-рецепторов, которые накачивают Na). Когда эти условия соблюдены — пробка из магния выбивается из NMDA, и он начинает запускать в клетку Na⁺ и Са²⁺. Кальций сыграет важную роль в хронизации процесса. Но об этом позже.
Помимо этих двух рецепторов на постсинаптической мембране находится NK-1 рецептор (не ионный канал), который реагирует на субстанцию Р — второй нейромедиатор боли. В отличие от глутамата, субстанция Р выбрасывается в синаптическую щель не всегда, а только при высокочастотном болевом импульсе (burst-активности = пачка из импульсов).
Дорсальный рог: пластины Рекседа и «ворота боли»
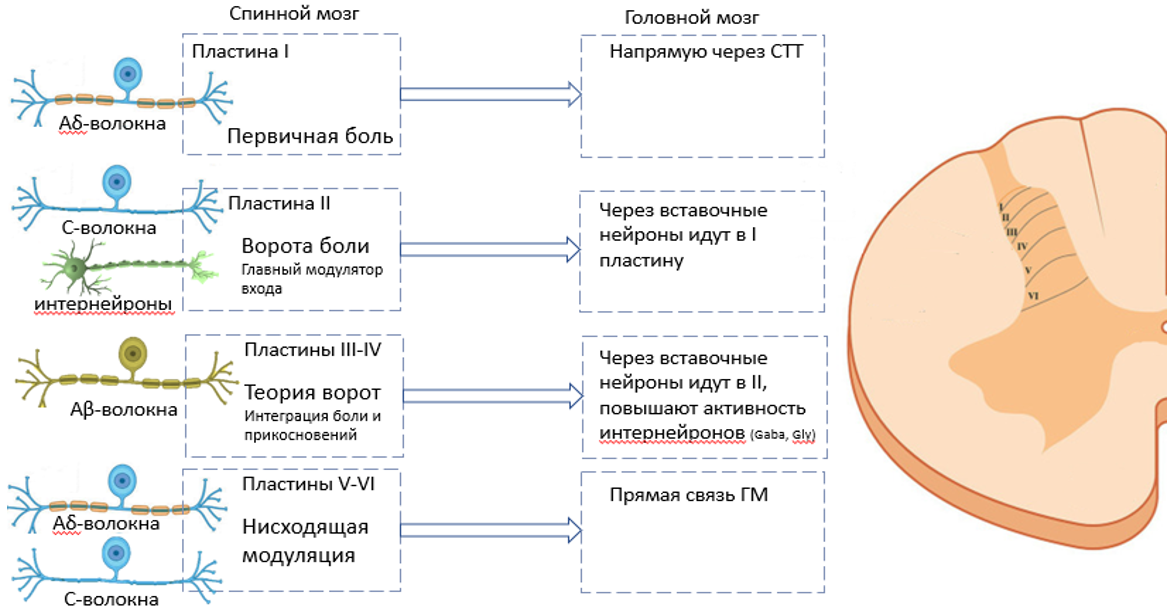
Итак, наш импульс добрался до дорсального рога спинного мозга. И тут тоже все не так просто. По теории Рекседа все серое вещество спинного мозга разделено на 10 пластин. И в плане боли нас будут интересовать первые VI.
- На I пластине — зона работы Aδ-волокон, которые напрямую через спиноталамический тракт передадут информацию о первичной боли в головной мозг.
- На II пластине основная масса волокон — С-волокна, а также большое количество тормозящих интернейронов (первая линия обороны от излишних болевых импульсов). Когда приходит сигнал, эти интернейроны (ГАМК-ергические и глициновые) выбрасывают нейромедиаторы — ГАМК и глицин, которые взаимодействуют с одноименными рецепторами на втором нейроне, что приводит к открытию каналов для Cl⁻. Отрицательный хлор входит в клетку, и если количество натрия не превышает количество хлора — сигнал подавляется, потенциал действия не возникает. Если Na все же больше — сигнал проходит дальше, но деполяризация меньше. Благодаря интернейронам данную пластину спинного мозга называют «Воротами боли» или «Главным модулятором входа».
- На III–IV пластине основная масса волокон не болевая, а тактильная, образованная Aβ-волокнами. И с этой пластиной связана «теория ворот» — интеграция боли и прикосновений. Когда мы ударяемся, мы можем растереть ушибленное место, тем самым простимулировать Aβ-волокна, которые донесут сигнал до III пластины, через вставочные нейроны сигнал убежит во вторую пластину и усилит работу тормозящей системы (ГАМК и глициновых интернейронов). Таким образом мы можем частично повлиять на интенсивность боли через прикосновения.
- На V–VI пластине снова основная масса волокон болевые, и сюда приходит сигнал из головного мозга об усилении или торможении боли (нисходящая модуляция).
Таламус: фильтр болевых сигналов
Из спинного мозга импульсы по спиноталамическому тракту добираются до таламуса — основного центра входа на уровне головного мозга. Таламус, как фильтр, обрабатывает все входящие сигналы, слабые сигналы гасятся, не достигая коры (через локальную систему тормозящих нейронов) + дополнительно кора сама может снижать количество импульсов от таламуса, когда она чем-то занята (например, решением задач или активным поиском еды, игрой). Таламус отправляет импульс в кору 2 путями — точечно через специфические ядра в отдельные участки соматосенсорной коры, и мы получаем четкое понимание того, что, где и как болит. Например, у нас изолированно болит 3-й палец на тазовой конечности, и это тянущая боль. Или диффузно — через неспецифические ядра таламус активирует всю кору, включая лимбическую систему, таким образом мы получаем дополнительно эмоциональную окраску происходящего. Второй путь объясняет, почему мы или наши пациенты не можем спать при выраженном болевом синдроме — кора постоянно активизируется таламусом, а в этих же структурах у нас обитает уровень сознания, при активной коре заснуть невозможно.
Перцепция и нисходящая модуляция боли
Итак, наш сигнал добрался до коры — это и есть фаза перцепции (восприятия). После этого начинается нисходящая модуляция — то есть принятие решения об усилении боли или снижении. Основным центром для принятия подобных решений является PAG — периакведуктальное серое вещество. Данная структура собирает информацию уже с различных участков коры, анализирует ее и дает сигнал — усилить/ослабить. Стоит оговориться, что не всегда импульсы идут через PAG, есть моменты, когда на анализ данных нет времени — острый стресс. В плане торможения боли — это «бей-беги»: нам нужно быстро заблокировать боль от сломанной конечности, чтобы добежать до безопасного места и спасти жизнь всему организму. Тогда сигнал из коры, минуя PAG, устремится в дорсальный рог спинного мозга, и боль снизится. Или наоборот, при панической атаке (остром стрессе) сигнал из амигдалы — центра страха, минуя PAG, убежит в дорсальный рог и усилит боль.
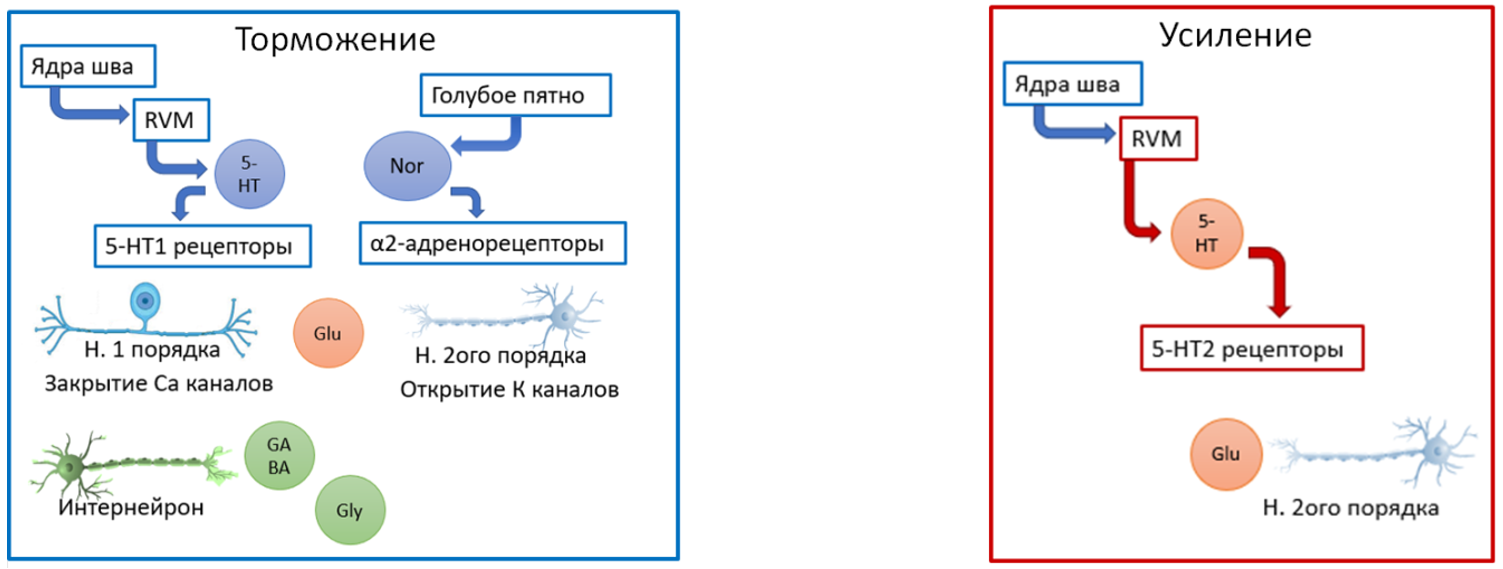
Независимо от того, через PAG или без его участия принято решение о торможении боли, сигнал побежит в RVM (ростральное вентромедиальное ядро) — основной источник серотонина (серотонин вырабатывается ядрами шва, но хранится в данном ядре) — и в голубое пятно — основной источник норадреналина. Эти 2 нейромедиатора на уровне дорсального рога взаимодействуют с 5-HT1-рецепторами (серотонин) и α2-адренорецепторами (норадреналин), что на нейронах первого порядка (пресинаптической мембране) закрывает Са-каналы — меньше Са, меньше везикул с глутаматом высвободятся в синаптическую щель. На нейронах второго порядка — открывают калиевые каналы, снижая возбудимость нейронов. Также норадреналин и серотонин воздействуют на тормозящие интернейроны (ГАМК и глициновые), усиливая их работу (больше хлора приходит во второй нейрон).
Если принято решение об усилении боли — тогда сигнал также бежит в RVM, но в его возбуждающую часть (двойной агент), также вырабатывается серотонин, но на уровне спинного мозга он взаимодействует не с 5-HT1, а с 5-HT2 рецепторами, что на нейронах второго порядка усиливает их чувствительность к глутамату (глутамата столько же — эффект выше). Серотонин — не «умная молекула», которая выбирает, куда ей идти, дело в разнице тропности серотониновых рецепторов и количестве вещества, которое вырабатывается при усилении или торможении боли.
Хронизация процесса
Итак, мы разобрали, как в норме проходит болевой импульс по нервной системе, теперь обсудим, на каких этапах что ломается в этой стройной схеме при хроническом процессе.
Периферическая сенситизация
И начнем опять с самого начала — ноцицептора и периферической сенситизации.
- В условиях хронического воспаления, под влиянием Са²⁺ и факторов роста, в ядре нейрона начинают происходить различные процессы, и происходит синтез новых патологических натриевых каналов, а плотность К-каналов на терминалях снижается. Происходит ионный сдвиг, благодаря которому снижается порог возбуждения ноцицепторов, и они становятся более легко возбудимыми.
- Активация «спящих ноцицепторов». Доказано, что 15–20% болевых рецепторов неактивны, в условиях хронического воспаления под влиянием цитокинов и факторов роста они приобретают чувствительность к механическим воздействиям. Таким образом мы получаем болевой импульс на прикосновение — один из механизмов гиперестезии.
- Сенситизация рецепторов трансмембранных потенциалов (TRPV1). Капсаициновый рецептор (капсаицин — вещество, содержащееся в жгучем перце) в норме молчит и активируется только в условиях выраженного ацидоза, при рН<5.5. В условиях хронического воспаления он становится менее избирательным и активизируется уже при рН 6.0, реже выше. Также снижается порог для его температурной чувствительности. Если в норме он активизировался при t 45°, то теперь ему достаточно температуры 42°, и мы получаем тепловую гипералгезию.
- Рост новых терминалей аксона — и все они включаются в процесс нейрогенного воспаления (о нем чуть позже) и отправляют болевые сигналы в дорсальный рог.
Нарушения проведения импульса по нервному волокну
На уровне трансмиссии (передаче нервного импульса по нервному волокну) в условиях хронического воспаления происходят свои патологические процессы.
- Нарушается селективная проводимость сигналов. Как мы помним, у нас есть миелинизированные, слабомиелинизированные и немиелинизированные волокна, которые с разной скоростью проводят нервный импульс. Миелин, как изолятор у провода, не дает сигналу рассеиваться. Когда у нас есть какая-то ишемия, травма или компрессия, в первую очередь страдает миелин, оболочка разрушается, и наш сигнал, во-первых, теряет привычную скорость проведения, во-вторых начинает рассеиваться.
- Могут возникать эфапсы — бессинаптические связи между нейронами. Например, наш сигнал может бежать по тактильному Aβ-волокну (миелинизированное) и из-за рассеивания сигнала перескочить на соседнее С-волокно (болевое) и дойти до дорсального рога уже как болевой импульс — еще 1 механизм развития гиперестезии.
- Мы также все знаем, что в миелинизированных волокнах все Na-каналы находятся в перехватах Ранвье, и сигнал перескакивает с одного перехвата на другой. В зоне, где миелин разрушился, начинают перераспределяться Na-каналы, также появляются патологические Na-каналы, и могут возникать эктопические разряды. Эктопические разряды — это спонтанно возникшие пачки из импульсов (та самая burst-активность), которая образуется не на терминали аксона, а где-то посередине (без прямого воздействия на сам ноцицептор).
- Появляется антидромный ход сигнала. В норме все сигналы бегут ортодромно — от периферии к центру. При возникновении эктопического разряда наш сигнал от места возникновения побежит не только ортодромно, но и антидромно — обратно к периферии. Пачка из импульсов ударяет по терминали, что приводит к выбросу субстанции Р и CGRP. CGRP (кальцитонин-ген-родственный пептид) — мощный вазодилататор, благодаря которому к месту контакта терминали с мышцей/связкой и т.д. будут приходить нейтрофилы, тучные клетки, выбрасываться провоспалительные цитокины и факторы роста. Таким образом мы будем видеть нейрогенное воспаление, исходящее из самой нервной системы. На этот воспалительный субстрат будут реагировать уже и сами ноцицепторы, отправляя новые и новые импульсы в дорсальный рог.
Ремоделирование дорсального рога
На уровне дорсального рога также происходит ремоделирование нервной системы. Вернемся к роли Са²⁺ в процессе хронического воспаления.
- Начнем с нейронов второго порядка. NMDA-рецепторы продолжают накачивать Са²⁺ в клетку. Кальций влияет на различные киназы в нейроне, и запускается синтез новых NMDA-рецепторов (было 10, стало 30), происходит фосфорилирование NMDA-рецепторов (они становятся более возбудимые, легче открываются). ГАМК-эргический сдвиг — еще 1 патологический механизм, который возникает при Са-перегрузке: в норме в нейроне есть молекула KCC2 (калий-хлор котранспортер), которая поддерживает баланс между внутриклеточным уровнем Cl и К и внеклеточным. Са²⁺ активирует определенный фермент, который разрезает молекулу KCC2, делая ее неактивной. Хлор начинает накапливаться внутри клетки, и в какой-то момент, при открытии каналов для хлора тормозящими интернейронами, хлор начинает патологически вытекать из клетки, а не заходить внутрь. Таким образом у нас появляется парадоксальное возбуждение нейрона вместо торможения.
- Под влиянием Са и факторов роста происходит спраутинг — разрастание дендритов на уровне дорсального рога. Тактильные волокна (Aβ) в норме должны оканчиваться на III пластине, но их дендриты начинают прорастать во II пластину и воспринимаются вторым нейроном уже как болевой импульс — еще 1 механизм развития гиперестезии.
- Са²⁺ влияет также и на сами интернейроны. ГАМК-ергические нейроны более чувствительны к кальциевой перегрузке, начиная с 3–7 дня воспаления Са приводит ГАМК-нейроны к апоптозу. И, к сожалению, данные нейроны не восстанавливаются. Глициновые интернейроны более стойкие, но их гораздо меньше в нервной системе, хотя и они при длительном воспалении не справляются с Са²⁺ и погибают.
- Микроглия тоже реагирует на Са²⁺ и начинает продуцировать медиаторы воспаления (провоспалительные цитокины и факторы роста), усиливает секрецию мозгового нейротрофического фактора. Данный фактор как раз участвует в образовании новых терминалей аксонов и дендритов. Также микроглия образует свободные радикалы, которые дополнительно повреждают окружающие клетки.
- Роль субстанции Р схожа с ролью Са²⁺ в поддержании воспаления. Она также участвует в фосфорилировании и увеличении числа NMDA-рецепторов, тоже активирует микроглию, участвует в гибели ГАМК-нейронов и дополнительно ингибирует захват глутамата астроцитами, продлевая его нахождение в синаптической щели.
Перестройка на уровне головного мозга
На уровне головного мозга также идет перестройка процессов:
- Из-за нарушения селективной проводимости в таламус начинают поступать импульсы с непонятной скоростью, и ему становится труднее точечно переадресовывать данные сигналы в соматосенсорную кору, и он расширяет границы ощущения боли, активируя большие участки коры, чем требуется. Как клинически это проявляется? Например, мы знаем, что у собаки есть хроническая протрузия в области L2–L3, которая может вызывать хроническую боль в данной области, но по осмотру при пальпации мы находим боль во всем грудопоясничном отделе или вообще по ходу всего позвоночника. Потому что в восприятии боли ключевую роль играет именно обработка сигнала корой (перцепция).
- Та самая burst-активность (пачка из импульсов) практически не блокируется интернейронами, с ней крайне сложно бороться, такие импульсы практически в неизменном виде перенаправляются от одной структуры к другой, в том числе в кору.
- Кора при постоянной хронической активации ослабляет свой контроль над таламусом, и фильтр работает еще хуже. Локальные ГАМК-интернейроны таламуса также страдают.
- Релейные ядра (RVM и PAG), которые участвуют как в торможении, так и в возбуждении, сенситизируются и все чаще сдвигают вектор в сторону возбуждения.
- При повторении таламокортикальных путей формируются более устойчивые связи, и формируется «болевая память» или предвосхищение боли. Например, собака, у которой когда-то сильно болела шея, может спокойно ротировать ее в разные стороны и не проявлять никаких признаков боли в обычной жизни, но при начале пальпации каменеет и сжимается. Или кошка, которая вся дрожит, прячется или шипит при одном только виде очередного шприца с ГКС, хотя формально боли мы ей еще в моменте не причиняли.
- Голубое пятно и ядра шва со временем истощают запасы норадреналина и серотонина + снижается количество клеток-мишеней для этих нейромедиаторов — ГАМК-эргических нейронов становится меньше.
Критерии диагноза «нейропатическая боль»
Когда мы говорим о нейропатической боли как о диагнозе, он не является основным. В подавляющем большинстве случаев всегда имеется первопричина — компрессионная миелопатия/врожденные аномалии развития со вторичными изменениями по типу сирингомиелии/перенесенные воспалительные заболевания и т.д.
Выделяют 3 критерия вероятности:
-
Возможный:
- боль с нейроанатомически правдоподобным распределением;
- анамнез или данные осмотра указывают на поражение соматосенсорной системы (и здесь мы говорим не столько про боль, сколько про нарушение чувствительности — стал шаркать, спотыкаться, или мы видим проприоатаксию/снижение установочных рефлексов и т.д.).
-
Вероятный: все вышеперечисленное + 1 из:
- сенсорные признаки (аллодиния, гипералгезия) в той же нейроанатомической зоне — то есть мы находим боль/дискомфорт на осмотре;
- результаты диагностики (МРТ/ЭНМГ/анализ спинномозговой жидкости/КТ и т.д.), подтверждающие поражение соматосенсорной системы. Например, мы видим на МРТ выраженную сирингомиелию в шейном отделе, которая в теории может вызывать нейропатическую боль.
- Определенный:
- локализация боли совпадает с результатами диагностики — например, мы видим на МРТ выраженную сирингомиелию и находим боль в шее.
Хронической нейропатическая боль считается, когда она персистирует или рецидивирует в течение 3 месяцев и больше. Однако в отличие от гуманной медицины мы не всегда можем отследить, когда начались признаки боли (в особенности хронической, неявной) — например, болеть в области крестца начало 2 месяца назад, где-то 4 недели назад пес перестал задирать конечность при мочеиспускании, а еще через 2 недели начал как-то скованно ходить, и владельцы это заметили, еще через н-дней пациент дошел до невролога.
Подходы к лечению хронической нейропатической боли
Теперь обсудим, что со всем этим делать.
Препараты, которые мы обычно используем для купирования острой боли (НПВС, лидокаин, метамизол натрия, фентанил, морфин), не будут как-то сильно влиять на процессы, происходящие в нервной системе при хронической боли. Однако всегда стоит помнить, что любая хроническая боль может быть с острым компонентом, и тогда мы будем использовать комбинацию препаратов от острой и хронической боли.
Какие же препараты для купирования (и профилактики развития) хронической боли мы используем?
Габапентин
Препарат, который работает как самостоятельно, так и в комбинации с другими препаратами. Наиболее частая комбинация — габапентин + амантадин. Почему? Потому что основной механизм работы габапентина связан с закрытием Са-каналов (через связь с α2δ-1 на Са-каналах) на нейроне первого порядка — меньше глутамата высвободится в синапс. А амантадин будет работать на нейроне второго порядка, блокируя NMDA-рецепторы (ускоряя их закрытие и какое-то время стабилизируя в закрытом состоянии).
Дополнительно габапентин имеет целый ряд других механизмов. В основном он действует через связь с α2δ-1 субъединицей.
- Препятствует образованию комплекса α2δ-1 с тромбоспондинами (TSP — вещества, которые выделяются астроцитами при повреждении нервной ткани). Формирование этих комплексов приводит к активации патологического синаптогенеза — образованию новых глутамат-ергических синапсов. К сожалению, габапентин не может повлиять на уже сформированный синапс, поэтому раннее добавление габапентина в терапию может профилактировать развитие хронической боли в дальнейшем: патологические синапсы начинают формироваться спустя 24–72 часа с момента повреждения нервной ткани. Данный механизм работает при экспозиции габапентина не менее 20 часов (т.е. назначать нужно минимум с кратностью приема 2 раза в день, 1 раз в день не поможет).
- Снижает фосфорилирование патологических Na-каналов через снижение экспрессии CaMKII — протеиназы, которая под влиянием Са²⁺ самостоятельно фосфорилируется и остается активной даже без дополнительного притока Са = молекулярная память.
- Снижение количества новых NMDA-рецепторов. α2δ-1 субъединица, как шаттл, транспортирует новообразованные внутри клетки NMDA-рецепторы на поверхность мембраны. Габапентин препятствует образованию связи α2δ-1 с NMDA, и транспортировки не происходит.
- In vitro доказан противовоспалительный эффект через связь с той же α2δ-1 субъединицей, но на поверхности макрофагов — снижает экспрессию провоспалительных цитокинов.
- Габапентин изначально создавался как агонист ГАМК-интернейронов, но, к сожалению, не сложилось. Габапентин не имеет влияния на ГАМК-нейроны, однако 1 механизм влияния на ГАМК-рецепторы на нейронах второго порядка (недавно) все же удалось доказать. Опосредованно габапентин увеличивает число δ-рецепторов ГАМК_А (один из типов ГАМК-рецепторов, ионотропный), благодаря чему повышается стабильный тормозной ток + появляется успокоительный эффект.
- Участие в нисходящей модуляции. У людей, испытывающих хроническую боль в пояснице более 3 лет, исследовали эффект от габапентина, который применялся в течение 3 недель. Оценивали уровень кровотока в области PAG (а мы помним, что при хронической боли PAG в основном усиливает боль). У пациентов выявили снижение кровотока в данной области, что коррелировало со снижением боли по шкалам оценки. Таким образом, благодаря различным механизмам, габапентин опосредованно участвовал в нисходящей модуляции (прямой механизм не изучен).
Амантадин
- Дополнительно также снижает окислительный стресс (через снижение количества провоспалительных цитокинов и факторов роста).
- Обладает дофаминергическим эффектом, однако он не достигается при использовании стандартных терапевтических доз.
- Слабо работает в монорежиме.
Другие препараты для контроля хронической боли
- Моноклональные антитела (фруневетмаб/бединветмаб) — работают на периферии, блокируют фактор роста нервов (NGF). Стоит помнить о рисках ускорения разрушения суставов на фоне снижения болевого синдрома и увеличения нагрузки на суставы.
- Кетамин — мощный блокатор NMDA-рецепторов, садится в пустое окно между белками (PCP). В литературе PCP описано как «фенциклидин» по старому препарату из гуманной медицины. У кетамина (как и у фенциклидина) нет конкурентов за данное место, он блокирует NMDA-рецептор вместо Mg.
- Топирамат — антагонист AMPA-рецепторов, блокирует Na и Ca каналы, снижая высвобождение глутамата, потенциирует ГАМК-рецепторы.
- Амитриптилин — препарат из группы антидепрессантов, который тоже можно встретить в комплексной терапии боли. Его часто используют, когда дополнительно есть какой-то психогенный паттерн. Работает через снижение обратного захвата серотонина и норадреналина, усиливая нисходящее торможение, а также блокирует Na-каналы.
- Также помимо амитриптилина из группы антидепрессантов используются дулоксетин и венлафаксин.
Итоги: почему лечение — «игра в долгую»
Мы разобрали огромное количество патологических процессов, которые происходят на различных этапах проведения болевого импульса. Когда мы ставим перед собой задачу взять под контроль хроническую боль, мы должны объяснить себе и владельцам, что это «игра в долгую». Не стоит отменять габапентин или иные препараты из списка препаратов хронической боли после недели применения. Часто от владельцев можно услышать: «мы подавали, не увидели эффекта, отменили». И дело не в том, что тот же габапентин не успевает накопиться — его концентрация в плазме достигается через 1,5–2 часа (и мы видим седативный эффект). Нам необходимо, чтобы препараты успели поработать с хроническими изменениями. Например, для того чтобы у нас снизилось число патологических Na-каналов, нужно, чтобы несколько циклов синтеза белков прошло в ядре, что по исследованиям занимает у молодых животных минимум 4 недели, а у возрастных животных или животных со сниженным метаболизмом — от 6 недель. Поэтому и эффект от лечения мы будем ожидать, переоценивать и корректировать терапию (при необходимости) не ранее чем через 1,5–2 месяца, не отменяя препараты. Это касается не только габапентина, а всех препаратов в контексте контроля хронической нейропатической боли.

 281


